Нигде в животном царстве не сказываются с такой силой приспособительные потенции организмов, как у паразитов. Приспособления паразитов к их специфическому образу жизни многочисленны и разнообразны, но главные категории следующие: форма тела, размеры и строение тела, окраска, органы прикрепления, выделительная, осморегуляторная и дыхательная системы, органы движения и половая система.
Форма тела. Общей чертой различных эктопаразитов (наружных) является сплющивание тела в дорзовентральном (спинно-брюшном) направлении, способствующее лучшему прикреплению к телу хозяина (оно может быть унаследовано от свободноживущих). Кишечные эндопаразиты также могут вести себя, как эктопаразиты. Например, лямблия (Lamblia), сплющенное тело которой вогнуто на одной стороне, причем этой вогнутостью паразит садится на свободные концы эпителиальных клеток кишечника. Но в основном для эндопаразитов характерна вытянутость и членистость тела. Внутренностные паразиты подчиняются совершенно иным принципам формообразования. Полостные паразиты отрезаны от внешнего мира, они гарантированы от отрыва от хозяина и в некотором смысле походят на яйцевые клетки хозяина по своим отношениям к окружающей среде. Многие полостные паразиты обладают примерно шаровидной формой тела, округлы, округло-овальны. Особенно ясна зависимость формы тела от локализации паразита у нематод Tetrameres, самка которых внедряется в стенку желудка птиц, тогда как самец сохраняет первичный способ паразитирования в просвете желудка. Самец остается вытянутым в длину, подобно прочим нематодам, тогда как у самки середина тела вздувается шаровидно. При внутренностном паразитизме есть случаи, когда наблюдается тенденция к увеличению поверхности тела, очевидно в целях усиления всасывания пищи.
Размеры тела. При переходе к паразитизму может наблюдаться увеличение тела паразита — паразитический гигантизм, например, у инфузорий, трихомонад термитов (Trichomonas termitus). Среди разнообразия жгутиконосцев, живущих в кишечнике термитов, встречаются виды, напоминающие по форме и размерам кишечных Mastigophora позвоночных: размеры их — в пределах величин, которые известны для немногих свободноживущих Polymastigida и составляют 15-20 мкм. Судя по всему, от подобных исходных форм, широко распространенных у разных групп животных (у амфибий, рептилий, птиц, млекопитающих), и ведут начало все разнообразные Mastigophora, для эволюции которых столь подходящим местом оказалась задняя кишка термитов, а некоторые трехжгутиковые Gigantomonas имеют размеры, достигающие 70 мкм.
Видимо, сыграла роль чисто клетчатковая диета, так как в термитах, питающихся грибами или смешанной пищей, жгутиконосцев очень мало, и размеры их очень малы. Таким образом, неограниченное количество хорошо усваиваемой пищи, всегда находящейся в распоряжении паразитов, очень часто приводит к увеличению размеров тела паразитических животных.
Окраска тела. Общим правилом для внутренних паразитов является отсутствие пигментации: беловатый или слегка желтоватый цвет тела. Отсутствие пигментации есть следствие нахождения паразитов в темноте, аналогичная картина наблюдается у многих пещерных или подземных животных. Но когда эндопаразиты все же так или иначе окрашены, цвет их зависит не от пигментации покровов, как это бывает большей частью у форм, живущих на свету, но от окраски кишечника, запасных питательных материалов, яиц и от наличия дыхательных ферментов. Например, розовый цвет - от присутствия гемоглобина, кроваво-красный цвет пигмента зависит от присутствия гемоглобина в полостной жидкости или тканях паразита и имеет дыхательное значение.
Эктопаразиты не отличаются по окраске от родственных им свободноживущих форм, так как вся имагинальная (конечная) стадия этих паразитов протекает на свету в обычных для паразитов условиях.
Органы прикрепления составляют одну из самых характерных особенностей большинства паразитов. Существует два основных типа прикрепления: крючки и присоски (многочисленные конвергенции, то есть схожие). Мало использованы приспособления типа клещей, ножниц или распорок.
- • Крючки и у простейших, например, у кишечных грегарин и инфузорий, служат для прикрепления и внедрения в эпителий.
- • Присоски представляют собой более или менее глубокие ямки на теле паразитов. Наличие присосок или присоскообразных приспособлений обнаружено у некоторых простейших, например, у лямблии (Lamblia): брюшная сторона ее тела вогнута, образуя обведенную тонким скелетным волокном ямку. Этой ямкой паразит садится на обращенные к просвету кишки концы кишечных клеток (у ворсинок) и может временно плотно приставать к ним. У инфузорий такие присоски существуют на разных местах тела.
- • Стилеты. Под таким названием можно выделить плотные, прямые, отходящие от переднего конца тела выросты, вонзающиеся в тело хозяина. В одних случаях стилеты не втяжные и служат для постоянного прикрепления. У жгутиконосцев Oxymonas из кишечника термитов имеется залегающая внутри тела осевая палочка аксостиль. На переднем конце тела аксостиль продолжается в длинное копье, которое вонзается в стенку кишечника хозяина.
- • Стрекательная нить. У микроспоридий споры содержат от одной до четырех овальных хитиновых мешочков — полярных капсул, внутри которых скручена в виде упругой спирали тонкая нить длиной более 500 мкм. При действии некоторых раздражителей (йод, азотная кислота и др.) или просто при механическом надавливании стрекательная нить с силой выворачивается из полярной капсулы наружу. В результате этого происходит прикрепление споры к стенке кишечника хозяина, и амебоидный зародыш, находящийся в споре, выходит из нее и внедряется в стенку кишки.
- • Липкие, или прядильные нити, — это продукт выделения особых желез: они позволяют паразитам приклеиваться к телу хозяина.
Пищеварительная система. Переход к паразитическому образу жизни отразился на пищеварительной системе. И способы питания отличаются от способов питания свободноживущих организмов. У кишечных и полостных паразитов преобладает осмотическое питание - через поверхность тела. Паразитические Mastigophora (кровяные и тканевые), например, трипаносомы и лейшмании, совершенно лишены пищеварительного аппарата. Полная редукция кишечника у довольно многих внутренних паразитов объясняется тем, что они живут в жидкостях (пищевая кашица, кровь, лимфа), содержащих вещества, которые животный организм может использовать почти без дальнейшей подготовительной обработки. Вследствие этого пищеварительный аппарат делается для паразита излишним, и паразит начинает всасывать питательные вещества стенками своего тела по образцу клеток хозяина. Одновременно отмечается тенденция к увеличению наружной поверхности, служащей для всасывания пищи.
Нервная система, особенно у эндопаразитов, упрощается. Например, утрачиваются органы чувств, которые могут быть у свободноживущих. (К примеру, у свободноживущего жгутиконосца эвглены зеленой имеется «глаз» в виде красного пятнышка в передней части тела, а у паразитических жгутиконосцев трихомонад «глаза» отсутствуют. - Т. Я. С.)
Выделительная и осморегуляторная системы. У паразитов выделительная система не показывает каких-либо специальных изменений. Исчезновение пульсирующих вакуолей отмечено: у всех споровиков (Sporozoa), амеб и жгутиконосцев. Тенденцию к атрофии выделительной системы паразитические простейшие разделяют с морскими Protozoa (простейшими), что зависит от сходных осмотических условий окружающей среды: они живут в среде, значительно более богатой солями, чем среда пресноводных. Поэтому разница в осмотическом давлении между содержимым их тела и окружающей средой меньше, чем у пресноводных форм, что снижает необходимость наличия особых аппаратов, откачивающих поступающую в тело извне воду, каковыми являются пульсирующие вакуоли.
Дыхательная система. Дыхание эктопаразитов подчиняется тем же законам, что и дыхание свободноживущих организмов. Полостные и тканевые паразиты находятся в тех же условиях дыхания, как и соседние ткани самого хозяина, то есть кислород доставляется им кровью хозяина или непосредственно органами дыхания хозяина. Совершенно особые условия дыхания окружают кишечных паразитов: они живут в почти бескислородной среде. Считалось, что кишечные паразиты обладают почти анаэробным типом обмена веществ, то есть источником их энергии являются процессы распада (брожения) углеводов и жиров, протекающие без использования свободного кислорода (накапливается гликоген, и источником энергии является его расщепление с выделением углекислоты и валериановой кислоты у аскарид). Но у кишечных паразитов наряду с анаэробными процессами имеют место и аэробные процессы, связанные с использованием свободного кислорода. Такой смешанный тип обмена веществ носит название аноксибиоз. У кишечных паразитов при аноксибиозе, благодаря низкому парциальному давлению кислорода, преобладают расщепительные процессы. Анаэробиоз благодаря отсутствию ресинтеза продуктов брожения характеризуется значительно меньшей энергетической эффективностью, чем оксибиоз. При аноксибиозе в зависимости от большей или меньшей степени преобладания анаэробных над аэробными процессами энергетическая эффективность может быть различной. Например, у аскариды в процессе обмена веществ освобождается примерно 9% той энергии, которая освободилась бы при полном окислении углеводов. Тем не менее по сравнению с анаэробными формами брожения у микроорганизмов (бактерий, дрожжей), аноксибиоз паразитических червей характеризуется все же относительно высокой энергетической эффективностью. Так, освобождение энергии при масляно-кислом брожении равно 2,2%, а при спиртовом брожении — 4% (по сравнению с полным окислением).
В теле паразитов-аноксибионтов почти всегда имеются значительные запасы гликогена (животный крахмал), который является основным источником энергии. Экспериментально доказано, что при переживании паразита вне тела, например, в растворах, лишенных питательных веществ (раствор Рингера), происходит трата гликогена. Чем выше температура и чем активнее движение паразита, тем быстрее потребляются запасы гликогена. Кроме гликогена, в тканях паразитов-аноксибионтов обычно отлагаются и значительные количества жира, который является конечным продуктом брожения гликогена.
Органы движения у паразитов подвергаются большей или меньшей редукции (упрощению).
Половая система. Функция размножения у большинства паразитов является особенно доминирующей: кроме обычных способов размножения часто появляются иные, усиливающие способность животных к размножению. В жизни паразитов решительно все функции вполне подчинены одной, а именно — функции размножения, что далеко не так ясно выражено у свободноживущих организмов. Паразитический образ жизни, прикованность паразитов к их хозяевам затрудняют встречу между особями разного пола.
Это характерный фактор паразитической жизни, приводящий к тому, что паразиты обнаруживают несомненную склонность к гермафродитизму (с признаками мужского и женского пола). Сам характер гермафродизма, а именно его способ происхождения у паразитов, может быть двояким:
- • объясняется историческим моментом — происхождением от гермафродитных свободных предков (к таковым относятся: усоногие, пиявки и др.);
- • влияние на половую систему паразитического образа жизни, так как свободноживущие были раздельнополые, к примеру, нематоды. Видимо, гермафродитные особи и возникли путем изменения самок и превращения их в гермафродитов.
Известен и обратный процесс возникновения в пределах гермафродитных групп отдельных раздельнополых видов с резким половым диморфизмом, например, самец и самка более или менее прочно связаны друг с другом на всю жизнь: сосальщики живут попарно в особых подкожных капсулах. Оказывают также влияние половые гормоны хозяина на развитие определенного пола паразита (Sch. mansoni).
Второй широко распространенный признак половой системы - это громадная плодовитость. Она помогает паразитам в борьбе с тем множеством неблагоприятных условий, которые приходится паразитам переживать во время сложного жизненного цикла (и здесь работает закон большого числа яиц). Увеличение плодовитости обусловливается двумя моментами:
- • усиленное питание паразитов, осуществляемое без всяких перерывов и перебоев, что способствует более сильному развитию половых функций;
- • непрерывно действующий естественный отбор наиболее плодовитых особей. Отбор этот находится в прямом соотношении с теми трудностями, которые встречаются на пути распространения паразитов и которые приводят к тому, что из миллионов зародышей достигнуть половой зрелости удается лишь единицам. Чем больше число зародышей будет гибнуть при преодолении этих трудностей, тем менее шансов будет для малоплодовитой особи длительно поддерживать существование вида.
В процессе эволюции малоплодовитые особи будут отметаться, и только способные давать максимально большое число потомства окажутся в состоянии распространяться в лице своих потомков на все новые и новые поколения хозяев.
Таким образом, крайнее увеличение плодовитости паразита главным образом обусловливается двумя моментами: усиленным питанием паразитов, осуществляемым без всяких перебоев и перерывов, и непрерывно действующим естественным отбором наиболее плодовитых особей. Не меньшие цифры дает также размножение некоторых паразитических простейших, у которых роль яиц в распространении вида играют цисты, то есть покоящиеся стадии. Например, человек, зараженный дезентерийной амебой, выделяет в день в своих экскрементах по 50 млн цист этих амеб.
Приспособления эмбриональных и ларвальных стадий паразита: яйцо — личинка
Эмбриональные стадии развития паразита (яйцо с зародышем, цисты) обнаруживают относительно мало специальных черт приспособления к паразитизму и нередко бывают относительно незначительно изменены по сравнению с близкими свободноживущими формами. Это объясняется тем, что во многих случаях развитие яиц паразитов происходит во внешней среде и не испытывает влияния со стороны хозяина. Эмбриональное развитие аскариды ничем не отличается от развития свободноживущих нематод. Но когда яйцо паразита развивается в организме хозяина, обычно имеется система оболочек, которая изолирует яйцо от окружающей среды, и эмбриональное развитие его протекает относительно автономно.
Отмечены два пути в обусловленном паразитизмом эмбриональном развитии:
- 1. Питание за счет хозяина, в результате чего все эмбриональные процессы упрощаются, кроме пищеварительной системы.
- 2. Способность зародыша, начиная с самых ранних стадий, извлекать питательные вещества из организма хозяина. Например, у наездников хорион (наружная оболочка зародыша) становится очень тонким и легкопроницаемым, а иногда и вовсе исчезает; яйца лишаются желтка и резко уменьшаются в размерах по сравнению со свободноживущими перепончатокрылыми. Образуются специальные трофические (для питания) оболочки, через которые и осуществляется питание эмбриона. Образуются эти оболочки или за счет одного из первых двух бластомеров дробления, или за счет ядер направительных телец, которые как бы отторгают от яйцевой клетки часть протоплазмы.
Вокруг зародыша образуется обычно соединительнотканная капсула хозяина, которая используется благодаря наличию амниона (амнион - одна из оболочек зародыша) для питания зародыша. Питание эмбриона за счет хозяина открывает новые эволюционные возможности: возникает полиэмбриония. При этом масса зародыша распадается на множество групп клеток, из которых каждая в дальнейшем дает личинку (Нечто подобное имеет место и у трихомонад. Во-первых, в одной амебовидной клетке может образоваться от трех до пяти цистоподобных клеток. При разрушении наружной оболочки происходит высвобождение сразу нескольких клеток. Во-вторых, цистоподобная клетка, разуплотняясь и увеличиваясь в размерах, затем гранулируется на мелкие частицы, так называемые тромбоциты. Эти процессы отражены на рис. 2 и на цветных фотоснимках моего «Атласа клеток крови и паразитов человека»).
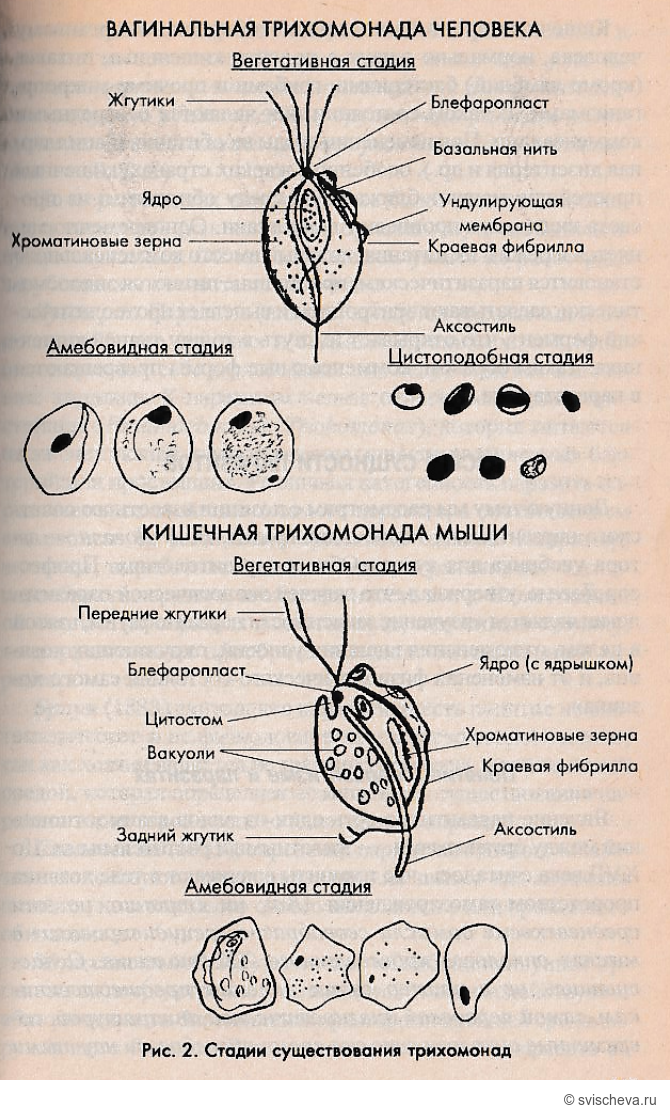
Полиэмбриония - это бесспорное следствие паразитизма и вместе с тем приспособление к паразитизму, значительно повышающее число особей вида. Это особая форма проявления общей закономерности, выражающейся в повышении плодовитости паразитов по сравнению со свободноживущими формами. Фаусек (1913) к этому добавлял: «Живорождение - это частный случай паразитизма, временный паразитизм в пределах одного вида каждого последующего поколения в предыдущем».
Комментарии (0)
Поделитесь мыслями или задайте вопрос. Комментарии появляются после проверки редакцией.
Комментариев пока нет. Вы можете начать обсуждение.